眼球在生长过程中发生调控性生长使物像焦点落在视网膜上,这一过程称为眼球的正视化。这里所说的调控通常指视觉对眼球生长的调控,而受到调控的是眼轴长度,主要是通过影响玻璃体腔长度和脉络膜厚度达到。在实验研究中,所使用的视觉刺激包括形觉剥夺(遮盖)[1-10]、光学离焦(透镜)[11-19]和单色刺激(单色光)[20-27]等。例如,给小鸡附加负透镜后其眼球能产生与透镜度数相当的近视[13]。在这个过程中,小鸡眼球发生玻璃体腔的延长和脉络膜变薄以抵消负透镜造成的光学焦点向后移动,不但眼球生长的方向与焦点移动方向一致,而且眼球生长的变化量与焦点移动距离相当。在单色光刺激实验中,无论是焦点向晶状体移动的 430 nm 单色光,还是焦点向脉络膜移动的 530 nm 单色光,豚鼠眼球都能够跟随单色光焦点变化方向进行生长,这与透镜诱导的情况相同[28]。豚鼠眼球这种单色光刺激产生的方向性生长不但在长期刺激下会产生,而且短期刺激也能够迅速发生[29-30]。然而豚鼠眼球的生长导致的屈光度变化要高于单色光造成的焦点变化,达到了数倍于色像差的结果[28]。这与鱼和鸡的实验研究情况不符,因为后两者的实验均显示单色光中的屈光补偿量与单色光间的色像差相一致[20-27,31]。
对于正视眼来说,中波长的光能最佳的聚焦在视网膜上,而其他波长的光会发生一定的离焦。有研究指出,由于同一屈光介质中短波长光的焦点变化较其他波长大,正视眼中短波长光离焦量最大,其焦点最靠近晶状体[27,32]。因此,通常眼球聚焦状态下短波长敏感视锥细胞接受短波长光刺激时候短波长光处于近视离焦状态,而长波长敏感视锥细胞的情况与其相反[25,33]。在单色光中由于单一类型的视锥细胞受刺激,此时的视觉机制可能发生变化,包括调节反应[34]。单独刺激人短波长敏感视锥细胞时受试眼会发生过度调节的现象,其原因可能是为了达到短波长敏感视锥细胞感光时倾向于近视离焦,从而产生过度调节[33,35]。而长波长光中的情况可能相反,出现调节不足。因此,前面提到的单色光中豚鼠过度屈光补偿可能与此时的调节异常有关。即豚鼠在短波长单色光中发生过度调节,在中波长或长波长单色光中发生调节不足。基于这样的假设,我们将饲养于不同单色光中的豚鼠进行调节麻痹处理,观察此时豚鼠眼球的屈光发育情况,以检验在调节系统受到影响的情况下豚鼠眼能否对单色光刺激产生预测性的生长,以及还能不能产生早期研究所发现的过度屈光补偿现象。
1 材料与方法
1.1 实验动物和实验设计
24 只 2 周龄三色种豚鼠,体重 90~110 g,屈光介质透明,被随机分成 3 组:蓝光组、绿光组和白光组。3 组分别在不同光照中连续饲养 6 周。实验过程中按实验动物使用的 3R 原则给予人道关怀。3 组豚鼠的双眼从实验开始点 1% 阿托品滴眼液,1 次/d。实验前和实验结束时测量所有豚鼠双眼屈光度、角膜曲率半径和眼轴参数。
1.2 饲养条件和光照设置
豚鼠饲养于暗室,室内环境温度维持在 22~26 ℃,相对湿度 55%~65%。专门制作 3 个木箱用于饲养豚鼠,木箱四周内壁涂装白色反光涂料,并开有小窗利于通风。木箱之间用遮光布完全隔开避免光线相互干扰。木箱内壁四周、上方及下方均安置二极管灯管,每面安装约 4~6 支。木箱内居中放置豚鼠饲养笼,尺寸为 80 cm×50 cm×40 cm,网眼大小为 1.5 cm×5.0 cm。根据动物分组使用3种不同的二极管灯管:蓝光组(λmax = 430 nm,半波宽 20 nm),绿光组(λmax = 530 nm,半波宽 30 nm),白光组(色温 5000 K)。根据豚鼠视锥细胞光谱敏感曲线,本研究中蓝光对应豚鼠 S 视锥细胞光谱吸收峰值,对 M 视锥细胞没有刺激作用,绿光组对应豚鼠 M 视锥细胞光谱吸收峰值,对 S 视锥细胞没有刺激作用[36]。白光具有覆盖上述两种单色光 LED 光谱范围的宽光谱且没有偏向。每组灯管光照强度由单独的调压器(德力西 TDGZ-50 调压器,调压范围 0~250 V)调节,并用 ILT1700 科研用辐射仪进行现场检测。已有研究显示豚鼠眼对等亮度和等光量子数照明产生相近的屈光发育变化[28],本研究选择将各组光照强度设置为光量子数一致,为 3×10⁻⁴μmol/(cm2·s)。测量点与笼内豚鼠眼球处于同一水平面。各组光照时间相同,由电子定时器统一控制,光照周期 12/12 h(光照时间 8 a.m.~8 p.m.)。具体饲养和照明设置参考了已有研究方法[28,30]。
1.3 眼球光学和生物学参数测量
眼球光学和生物学测量采用单盲法,由两位研究者完成。由于豚鼠性情温顺且配合检查,故无需进行全身麻醉。验光过程在暗室中进行,验光前豚鼠双眼均使用 1 % 阿托品滴眼液(复旦大学附属眼耳鼻喉科医院)点眼,3 次/d,持续 3 d,第 4 天验光。参考文献[37],屈光度使用带状光检影获得,以水平和垂直屈光度的平均值记录,准确度为 0.25 D。豚鼠角膜曲率半径由角膜曲率计(OM-4,日本 Topcon 公司)前加+8 D 镜片检查获得。记录数据为水平和垂直子午线读数的平均值。具体测量方法可见于之前文献中的详细描述[37-38]。A 超(11 MHz;Optikon Hiscan A/B)测量在上述测量完成后进行,测量前使用表麻剂 0.4% 盐酸奥布卡因(日本Santen 公司)进行眼球表面麻醉。A 超测量参数包括眼轴、前节长度(角膜厚度+前房深度)、晶体厚度和玻璃体腔长度。测量中设置超声波在介质中的传播速度为 1540 m/s(前节和玻璃体腔)和 1645 m/s(晶状体)[9,37]。测量中各界面回波清晰才可判断为有效测量,且测量 10 次取平均值作为最终结果。
1.4 统计学处理
采用 STATA 15.0 软件进行数据分析。各组豚鼠只取右眼参数。组间参数比较采用方差分析,两两比较采用 Bonferroni 法。以 P < 0.05 为差异有统计学意义。
2 结果
2.1 眼球屈光度的变化
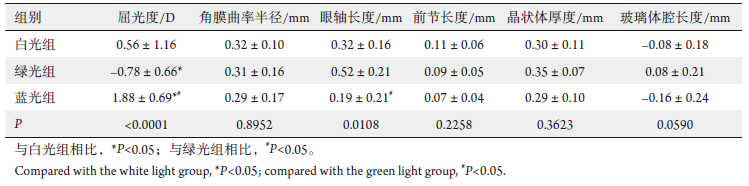
实验开始时 3 组平均屈光度大约为 4.3 D(P = 0.9752,表 1),但实验结束时 3 组屈光度差异显著(P < 0.0001,表 2)。6 周时,白光组平均屈光度约为 4.84 D,绿光组平均屈光度约为 3.47 D,蓝光组平均屈光度约为 6.19 D,各组两两比较差异均有统计学意义(P < 0.05,表 2)。实验结束时与实验开始时相比,白光组屈光度增加约 0.56 D,绿光组减少约 0.78 D,蓝光组增加约 1.88 D,3 组屈光度变化量比较差异显著(P < 0.0001,表 3),各组两两比较差异均有统计学意义(P < 0.05,表 3)。
2.2 角膜曲率半径、前房深度和晶状体厚度的变化
各组角膜曲率半径实验开始时约 3.4 mm(P = 0.8820 , 表 1 ),实验结束时约 3.7 mm(P = 0.3930,表 2 ),实验前后变化量约为 0.3 mm(P = 0.8952,表 3 )。各组前房深度实验开始时约 1.3 mm(P = 0.5763,表 1 ),实验结束时约 1.4 mm(P = 0.0931,表 2 ),实验前后变化量约为 0.1 mm(P = 0.2258,表 3)。各组晶状体厚度实验开始时约 3.2 mm(P = 0.9855,表 1)增加到实验结束时约 3.5 mm(P = 0.1663,表 2),实验前后变化量约为 0.3 mm(P = 0.3623,表 3)。虽然这些眼球生物学参数在实验前后发生变化,但无论在实验开始时还是结束时各组间差异无统计学意义(均 P > 0.05)。
Table 1 Measurement of parameters in the right eyes of guinea pigs among the three groups at the beginning of the experiment
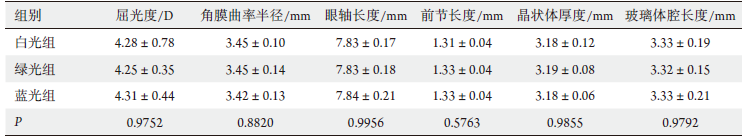
表 2 实验结束时 3 组右眼的参数
Table 2 Measurement of parameters in the right eyes of guinea pigs among the three groups at the end of the experiment
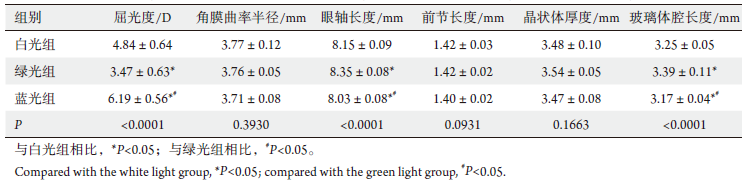
表 3 实验结束时 3 组右眼参数变化量
Table 3 Parameter variation in the right eyes of guinea pigs among the three groups after the experiment
2.3 眼轴和玻璃体腔长度的变化
各组眼轴长度在实验开始时均约为 7.8 mm(P = 0.9956,表 1)。实验结束时3组间眼轴长度比较差异有统计学意义(P < 0.0001,表 2 ),其中白光组平均约为 8.15 mm,绿光组平均约为 8.35 mm,蓝光组平均约为 8.03 mm。各组间两两比较均有统计学意义(P < 0.05,表 2 )。实验过程中白光组眼轴增长约 0.32 mm,绿光组增长约 0.52 mm,蓝光组增长约 0.19 mm。3 组眼轴变化量比较显著差异有统计学意义(P = 0.0108,表 3),其中绿光组与蓝光组两两比较差异显著(P = 0.009,表 3),而其余两两比较差异无统计学意义。
各组玻璃体腔长度在实验开始时测量值相近,约为 3.3 mm(P = 0.9792, 表 1 )。实验结束时白光组约为 3.25 mm,绿光组约为 3.39 mm,蓝光组约为 3.17 mm,3组间差异有统计学意义(P < 0.0001,表 2)。此时白光组与绿光组玻璃体腔长度相比差异有统计学意义(P = 0.003,表 2),绿光组与蓝光组相比显著差异有统计学意义(P < 0.001,表 2 ),而白光组与蓝光组相比差异无统计学意义(P = 0.127,表 2)。实验过程中白光组玻璃体腔长度变化为(−0.08±0.18) mm,绿光组为(0.08±0.21) mm,蓝光组为(−0.16±0.24) mm,3 组间玻璃体腔长度变化差异无统计学意义(P = 0.0590,表 3)。
3 讨论
各组实验开始时屈光度相近,当实验结束时发生不同变化。绿光组屈光度减少,同时伴有显著的眼轴和玻璃体腔长度的延长。蓝光组屈光度增加,同时伴有显著的玻璃体腔长度缩短。白光组虽然出现前房深度和晶状体厚度增加导致眼轴延长,但由于玻璃体腔长度略有缩短而使得屈光度有少量增加。整个实验中各组角膜曲率半径、前房深度和晶状体厚度均有增加,但各个时点水平及变化量比较差异无统计学意义,说明实验因素对这些参数无影响。
本研究中白光组未出现预测的正视化过程,反而出现玻璃体腔缩短向远视漂移的情况,不排除其由实验测量误差、样本量限制、观察时间不足等可能原因引起。另外,可能原因还包括阿托品对视觉反馈机制的影响以及对正视化效应器如巩膜、脉络膜等塑形变化的影响。
对比已有文献[28-30]报道,本研究两种单色光中豚鼠眼虽然受到阿托品的作用,但还能够如前期研究提示的单色像差变化方向进行屈光发育。点阿托品后,豚鼠眼球的视觉生理受到一定影响,但单色光诱导信号的方向识别未受到影响,与预测方向一致。即在短波长单色光中豚鼠眼玻璃体腔延长受到限制,屈光度向远视发展;在中波长单色光中豚鼠眼玻璃体腔延长受到促进,屈光度向近视方向发展[28]。
本研究绿光组和蓝光组于实验结束时的屈光度差值约为 2.7 D,其仍大于这两种波长单色光间约 1.5 D 的纵向色像差[28]。参考已有单纯单色光作用研究[28],6 周时这两种波长光照后豚鼠眼屈光度差值约为 3.8 D,与本研究 6 周时结果不同。显然,在本研究结束时单色光导致的屈光度变化受到一定因素的影响而低于预计度数。再看玻璃体腔长度的差异,已有研究[28]报道两组 6 周时差值约为 0.29 mm,而本研究约为 0.22 mm。两项研究中玻璃体腔长度的差异与屈光度差异在数值比例上是一致的。同时也说明单色光等研究因素是通过影响玻璃体腔长度导致屈光度的变化的,这与正视化及屈光发育理论是一致的。与之前研究[28]相比,本研究不同为实验眼加滴阿托品溶液,单色光光照相同,但实验结果在数值上产生差别。因此产生差别的原因主要在加滴的阿托品溶液上。阿托品产生作用的机制值得讨论和研究。
本研究中,绿光组与白光组相比 6 周时屈光度差值约为 1.37 D,玻璃体腔长度差值约为 0.14 mm;蓝光组与白光组相比 6 周时屈光度差值约为 1.35 D,玻璃体腔长度差值约为 0.08 mm。前述研究中[28],绿光组与白光组相比 6 周时屈光度差值约为 1.25 D,玻璃体腔长度差值约为 0.11 mm;蓝光组与白光组相比 6 周时屈光度差值约为 2.50 D,玻璃体腔长度差值约为 0.18 mm。由此可见,本研究中阿托品对蓝光组的影响大于对绿光组的影响,其原因及机制值得讨论。
上述讨论已经明确阿托品对单色光诱导豚鼠屈光发育过程会产生影响,主要表现为影响玻璃体腔长度,从而导致屈光度变化幅度减少,但方向不受影响。同时,阿托品对中波长光的作用影响不大,但对短波长光的作用影响较大。结合阿托品对调节麻痹的作用可以推测:中波长光对豚鼠眼的调节影响不大;豚鼠在短波长光中很可能发生调节过强。这与之前研究[33,35]提示的受试眼在短波长光中出现调节过强是一致的。豚鼠在短波长光中调节系统反应灵敏,虽然发生高于平常水平的过度调节,但因此可能具有较好视力,同时能较好的调节眼球的生长进行屈光补偿,结果导致屈光度变化量较大。鉴于豚鼠视网膜上广泛分布的高密度短波长敏感视锥细胞,这一推测具有较高的可能性[36,39]。
至本研究结束,两种单色光间产生的豚鼠屈光度差异仍要大于两种波长间纵向色像差的数值,一方面可能豚鼠眼受单色光刺激后产生多重作用,虽然阿托品限制调节系统的影响,但仍有其他作用未受影响导致过度屈光补偿。另一方面,阿托品对调节系统的抑制作用可能还不够完全,虽然有一定程度的减少,但还是产生了高于纵向色像差的屈光补偿。有关这一推测还需进一步研究证实。